《Nature Immunology》に掲載されたマウス研究は、同一エピトープを用いてクローンCD4 T細胞を追跡し、抗原が腸上皮細胞の細胞質に注入されるかどうかが、抗原の豊富さではなく、粘膜CD4 T細胞反応の強度と記憶の行方を決定することを見出した。細胞質への抗原送達は上皮内組織常在性記憶T細胞(TRM)を誘導し、膜関連抗原は記憶細胞をGALTへと偏らせる。この研究は粘膜ワクチン設計に検証可能な仮説を提供する。
研究背景:同一の細菌でも、抗原の運命は異なる
粘膜免疫の基本的な問いの一つは、T細胞がどのように病原体を認識するかである。CD4 T細胞が認識するのは、MHCクラスII分子によって提示されるペプチドである。MHCクラスII分子は主に樹状細胞、マクロファージ、B細胞などの「専門的」抗原提示細胞に発現している。
しかしバリア組織の上皮細胞も、感染時にMHCクラスII分子の発現を誘導され、「非専門的」抗原提示細胞として機能しうる。これらは共刺激分子を欠くため、ナイーブT細胞を直接活性化することはできないが、病原体抗原を提示することでCD4 T細胞のヘルプを動員する可能性がある。
これまでの研究で、マウス腸管病原体Citrobacter rodentiumが遠位結腸細胞に選択的に定着し、これらの細胞によるMHCクラスIIの発現に依存してIL-22産生CD4 T細胞を動員することが見出されている。しかし、細菌のどの病原因子タンパク質がCD4 T細胞反応を駆動するのかという重要な問いは未解決のままであった。これらのタンパク質が細菌表面、上皮細胞膜、あるいは上皮細胞質のどこに位置するかが、反応の質と強度に影響するのかどうか。
研究目的:「抗原の位置」を唯一の変数にする
研究チームの目的は明確であった。ペプチドとMHCクラスIIの親和性を一定に保ち、抗原の宿主細胞内における亜細胞局在のみを変化させ、クローンCD4 T細胞反応がどのように変化するかを観察することである。
彼らはリンパ球性脈絡髄膜炎ウイルス(LCMV)のgp66-80ペプチドを、SMARTA TCRトランスジェニックCD4 T細胞の既知抗原として選択し、これを4種類のCitrobacter rodentium病原因子タンパク質に融合させた。すなわち、細菌外膜に位置するアドヘシンintimin、上皮細胞に注入された後頂端膜に局在するTir、細胞質にびまん性に分布するNleA、そして細菌付着部位に集積する細胞質エフェクタータンパク質EspZである。
これにより、同一エピトープが異なる「キャリアタンパク質」によって異なる位置へと運ばれ、抗原投与量やペプチド親和性などの変数が可能な限り制御された。
研究方法(簡略):工学菌株とクローン追跡
研究者らは上記の融合タンパク質を発現する等遺伝子Citrobacter rodentium株を構築し、その病原性が野生型と同等であることを検証した。続いて、ナイーブCD45.1+ SMARTA T細胞をマウスに養子移入し、異なる菌株で感染させ、感染後の異なる時点で結腸組織中の抗原特異的T細胞を回収した。
フローサイトメトリーによる定量に加え、免疫蛍光、ライトシート蛍光顕微鏡による三次元イメージング、単一細胞RNAシーケンシング、条件的ノックアウトマウス、LIPSTIC細胞相互作用標識などの技術を組み合わせ、数量、空間的位置、転写プログラムの三つの層からT細胞反応を描出した。
主要な発見:細胞質への抗原送達が桁違いの差異をもたらす
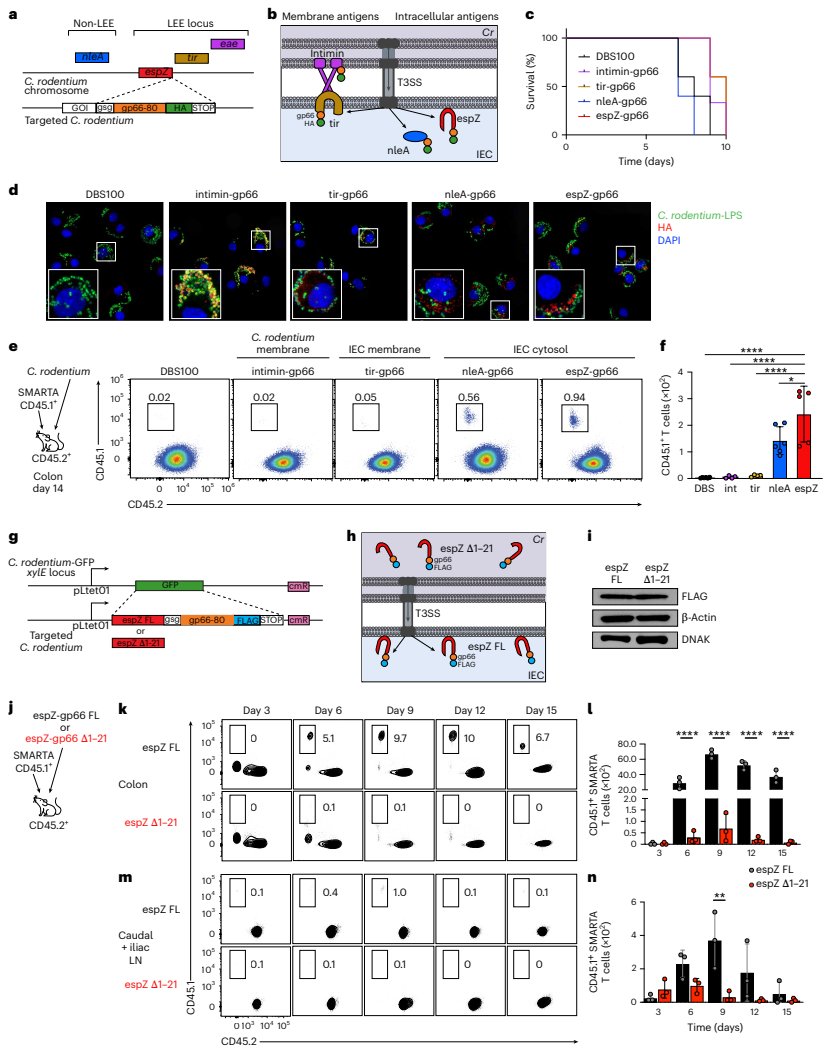
最も直感的な結果は感染後14日目に現れた。intimin-gp66と比較して、nleA-gp66およびespZ-gp66はそれぞれ28倍および47倍のSMARTA T細胞の結腸への集積を誘導した。一方、膜に局在するintiminとTirは、細菌表面であれ上皮細胞膜であれ、有意な反応を誘導しなかった。
さらに重要なことに、Tirは検出された中で最も豊富なタンパク質であったにもかかわらず、ほとんど反応を引き起こさなかった。EspZは豊富さが低いにもかかわらず、強い反応を誘導した。これは免疫原性を決定するのが抗原の量ではなく、抗原が存在する区画であることを示している。
4種類のキャリアタンパク質の構造差の影響を排除するため、研究者らはさらに全長EspZとN末端21アミノ酸を欠失したEspZ Δ1–21を比較した。両者はタンパク質とエピトープが同一で豊富さも同等であり、宿主細胞質に注入されうるかどうかだけが異なる。その結果、全長EspZが誘導する粘膜SMARTA T細胞はΔ1–21変異体よりも100倍以上多かった。
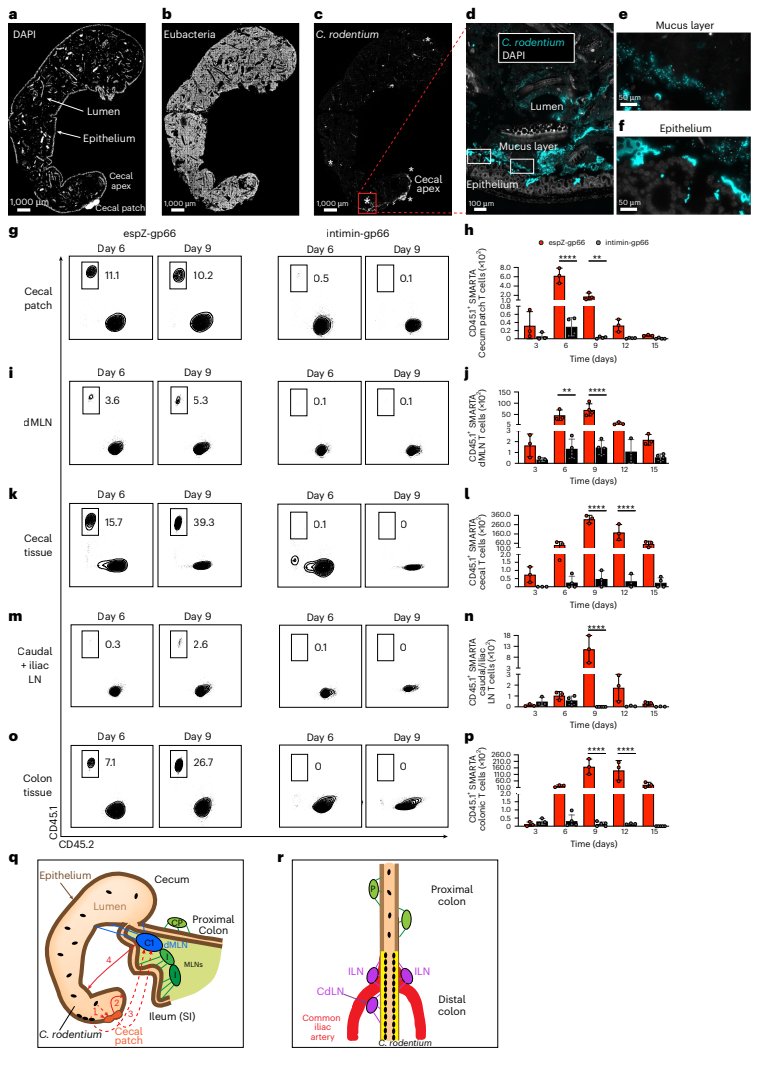
空間的追跡により、反応は最初に盲腸所属リンパ節で開始され、その後細菌の遠位結腸への拡散に伴って広がることが示された。一方、intimin-gp66の反応は各部位、各時点で明らかに弱く、弱い反応が誘導部位の違いによるものではないことを示している。
革新性または突破口:上皮細胞のMHCクラスIIが記憶の運命を形作る
研究はさらに問いを深めた。これらのT細胞はその後どこへ行き、何になったのか。
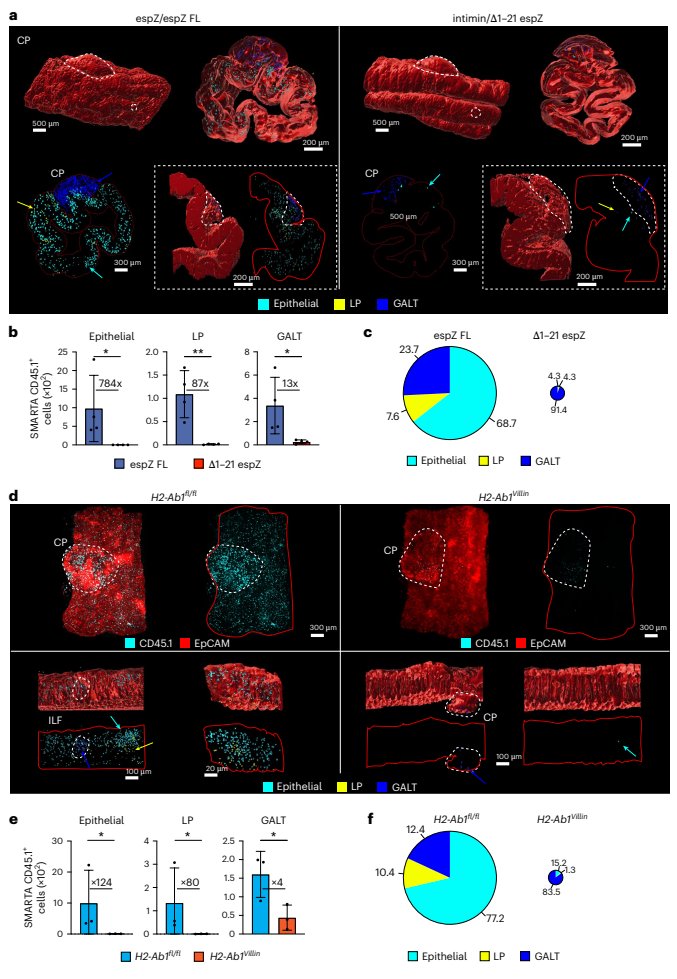
感染後42日目、すなわち細菌排除の3週間後、細胞質抗原によって誘導されたSMARTA細胞は結腸上皮内に多数存在し、そのうちCD69+CD103+およびCD69+CD103−のTRM表現型が優勢であった。一方、intimin-gp66によって誘導された記憶細胞はごく少なく、90%以上がGALTに限局していた。
上皮細胞特異的MHCクラスIIノックアウトマウス(H2-Ab1Villin)を用いて、研究者らは上皮細胞のMHCクラスIIがTRMの発生と維持の両方に不可欠であることを証明した。記憶期に誘導したノックアウトでも同様にTRM数が減少し、この提示が一回限りの事象ではなく、上皮内T細胞を継続的に維持していることを示している。
LIPSTIC標識実験はさらに、感染後42日目に上皮内CD4 TRMの約79%が腸上皮細胞とMHCクラスII依存的な接触を有するのに対し、固有層T細胞ではこのような接触が明らかに少ないことを示した。
単一細胞トランスクリプトームは、上皮抗原提示を欠く場合、記憶T細胞が中央記憶様プログラムへと転換し、Klf3、Klf4、Socs3、Ccr2などのマーカーを発現する一方、Itgae、Jun、Ifng、Ccl5、Gzmaなどの組織常在関連転写産物が下方制御されることを明らかにした。
実際的意義:粘膜ワクチン設計への手がかり
この研究の意義は、一つの細菌感染モデルを説明するにとどまらない。それは操作可能な免疫学の原則を提唱している。抗原が上皮細胞質へ進入する経路が、粘膜CD4 TRMの形成効率を決定する可能性がある。
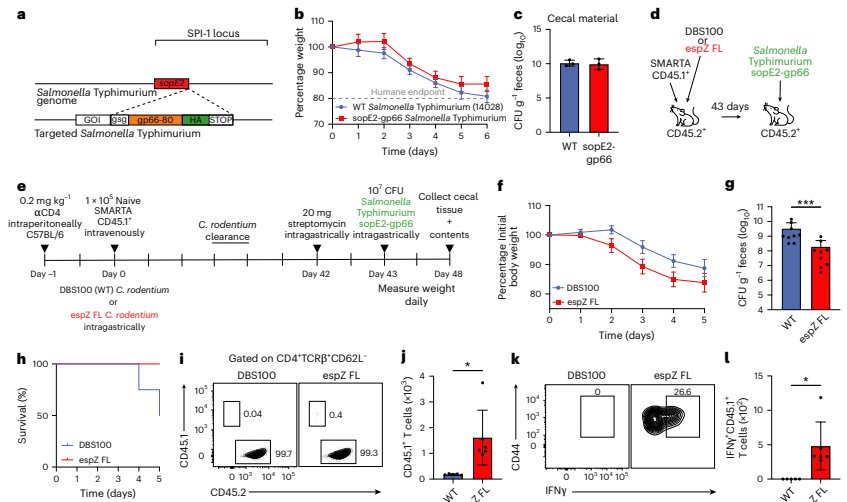
異種再攻撃実験では、EspZ FL(細胞質送達)で感作されたマウスは、その後同一エピトープを発現するSalmonella Typhimuriumで攻撃された際、盲腸の細菌負荷が有意に低く、5日以内にすべて生存した。一方、野生型感作群の生存率は50%にとどまった。回収されたSMARTA細胞数はより多く、再刺激後のIFNγ産生能もより強かった。
研究者らは限界も指摘している。これはマウスモデルであり、トランスジェニッククローンT細胞と工学菌株を用いていること、ヒトの粘膜免疫が同様の規則に従うかはなお検証が必要であること。さらに、上皮細胞による抗原提示の分子機構、たとえばマクロオートファジーに依存してMHCクラスIIにロードされるかどうかは、さらなる研究が待たれる。
まとめと考察
この研究は「抗原がどこにあるか」を定量化可能な免疫学の変数へと変えた。同一細菌の同一エピトープが、宿主上皮細胞質に注入されるかどうかだけによって、桁違いに異なるCD4 T細胞反応を生み出し、記憶細胞が上皮前線にとどまるかリンパ組織へ戻るかを決定する。
粘膜ワクチンおよびアジュバント設計にとって、これは送達経路そのものが免疫原性の一部でありうることを示唆している。しかし未解決の問いは依然として残る。ヒトの腸管において、抗原を安全かつ制御可能に上皮細胞質へ送り込み、十分に持続するTRMを誘導できるのか。これにはより多くのトランスレーショナル研究による回答が必要である。