樹状細胞の過剰活性化は多くの自己免疫疾患における鍵となる段階であるが、その代謝制御機構は長らく不明であった。『Journal of Experimental Medicine』に発表された研究(J. Exp. Med. 2026;223:e20252558)は、Vanin酵素がパンテチン(pantethine)を加水分解することでコレステロールと脂質ラフトの蓄積を駆動し、それによって樹状細胞の活性化を促進することを見出した。乾癬様マウスモデルおよび患者由来細胞において、パンテチンの補充またはVaninの阻害はいずれもこの過程を減弱させた。エビデンスは主にマウスモデル、in vitro細胞実験、および小規模な研究者主導臨床試験に由来する。
研究背景:過剰活性化した樹状細胞はどこから来るのか
樹状細胞(dendritic cell、DC)は専門的な抗原提示細胞であり、自然免疫と適応免疫の橋渡しを担う。抗原や危険信号による刺激を受けると、DCはCD80、CD86およびMHC分子をアップレギュレートし、サイトカインを分泌して、T細胞応答を開始する。
問題は、このプログラムがひとたび制御を失うと、免疫恒常性が破綻することである。乾癬や全身性エリテマトーデスなどの自己免疫疾患では、いずれもDCの異常な活性化が観察される。したがってDCは魅力的な介入標的と見なされている。
近年の研究は、代謝経路がDC活性化の調節因子であることを示唆しており、解糖系、アミノ酸代謝、脂肪酸代謝がいずれも関与している。しかし、これらの代謝ノードを治療戦略に転換できるかどうかについては、依然として直接的なエビデンスが不足している。Vanin酵素ファミリー(VNN1、VNN2、VNN3)はパンテチンを加水分解してパントテン酸とシステアミンを生成するが、これまでは主に感染や腫瘍関連のマーカーとして議論されており、DC機能におけるその役割はほとんど空白であった。
研究目的:一つの代謝軸がDCを制御するかどうかの検証
研究チームが提唱した中心仮説は、Vanin-パンテチン軸がDC活性化の鍵となる代謝調節経路であり、この軸への介入が自己免疫性炎症を軽減しうるというものである。
この仮説に基づき、研究は三つの層で進められた。まず患者のトランスクリプトームデータから手がかりを探し、次に遺伝子ノックアウトと薬理学的ツールを用いて因果関係を検証し、最後に動物モデルおよび患者由来細胞において臨床応用の可能性を検討した。
研究方法(概要)
研究はまず、複数の自己免疫疾患患者の末梢血単核細胞および骨髄系DCの公開トランスクリプトームデータを解析し、Vaninファミリー遺伝子の発現を比較した。
細胞レベルでは、マウス骨髄由来DC(BMDC)およびヒト単球由来DCを用い、siRNAノックダウン、遺伝子ノックアウト、TLRアゴニスト刺激を行い、抗原提示実験およびOT-II T細胞との共培養により機能を評価した。
動物レベルでは、DC特異的Vnn3ノックアウトマウスを作製し、イミキモド(IMQ)誘導乾癬様皮膚炎モデルにおいて表現型を観察した。同時に、パンテチン補充およびVanin阻害剤RR6の二つの方法で介入を行った。
機構レベルでは、液体クロマトグラフィー-質量分析により代謝物を検出し、Filipin IIIおよびコレラ毒素Bサブユニットを用いてコレステロールと脂質ラフトを標識し、TLR4の膜局在および下流のNF-κB、MAPKシグナルを追跡した。
主要な発見:パンテチンが減少するとコレステロールが蓄積する
第一に、Vanin遺伝子は活性化DCにおいて有意にアップレギュレートされる。複数の自己免疫疾患患者の末梢血およびDCトランスクリプトームにおいて、VNN1、VNN2、VNN3の発現が上昇していた。マウスBMDCではLPS刺激後、Vnn3が主要なアップレギュレートサブタイプであった。乾癬病変部では、VNN1、VNN3が活性化DCの特徴遺伝子と正の相関を示した。
第二に、Vnn3の欠失はDC機能を減弱させる。Vnn3をノックアウトまたはサイレンシングすると、DCの抗原取り込みと提示が低下し、CD80、CD86、MHC分子の発現が減少し、T細胞の増殖を開始させ、IFN-γ、IL-17、IL-4を分泌する能力が減弱した。注目すべきは、この抑制が耐性型への転換ではないことである。制御性T細胞の誘導は増加せず、IL-10およびPD-L1も上昇しなかった。
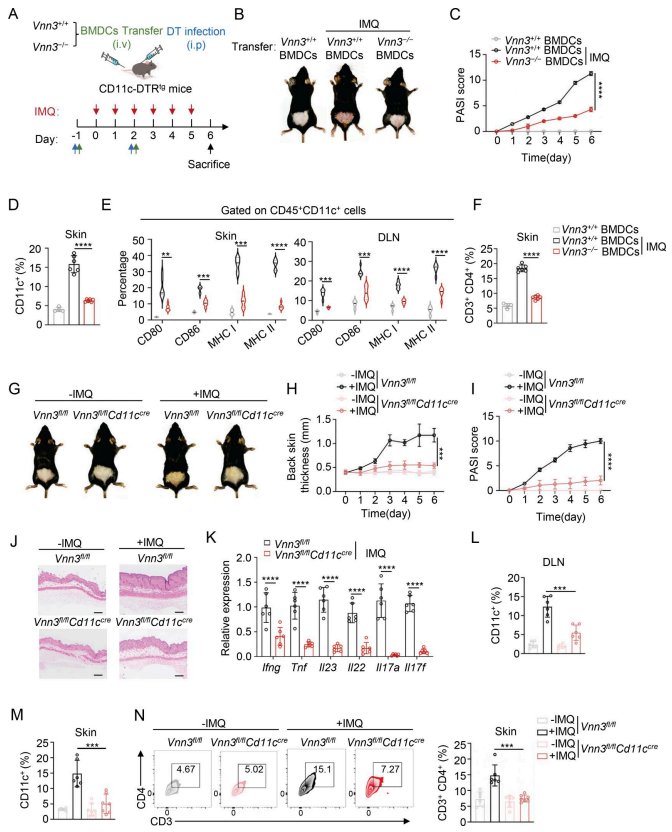
第三に、動物モデルが因果関係を検証した。DC特異的にVnn3を欠失したマウスでは、IMQ誘導下で皮膚病変がより軽度であり、PASIスコアがより低く、表皮肥厚および炎症性浸潤が軽減し、皮膚におけるIfng、Tnf、Il23、Il22、Il17a、Il17fの発現が低下した。
第四に、機構はコレステロールと脂質ラフトに帰着する。Vaninはパンテチンを加水分解するが、パンテチンはHMG-CoA還元酵素を阻害しうる。Vnn3の欠失によりパンテチンが細胞および血漿中に蓄積し、DC内のコレステロールおよび脂質ラフト含量が低下した。外因性コレステロールの補充は、パンテチンによるDC活性化の抑制を逆転させることができた。脂質ラフトの完全性が損なわれると、TLR4の膜上への集積が減少し、下流のNF-κBおよびMAPKシグナルが減弱した。
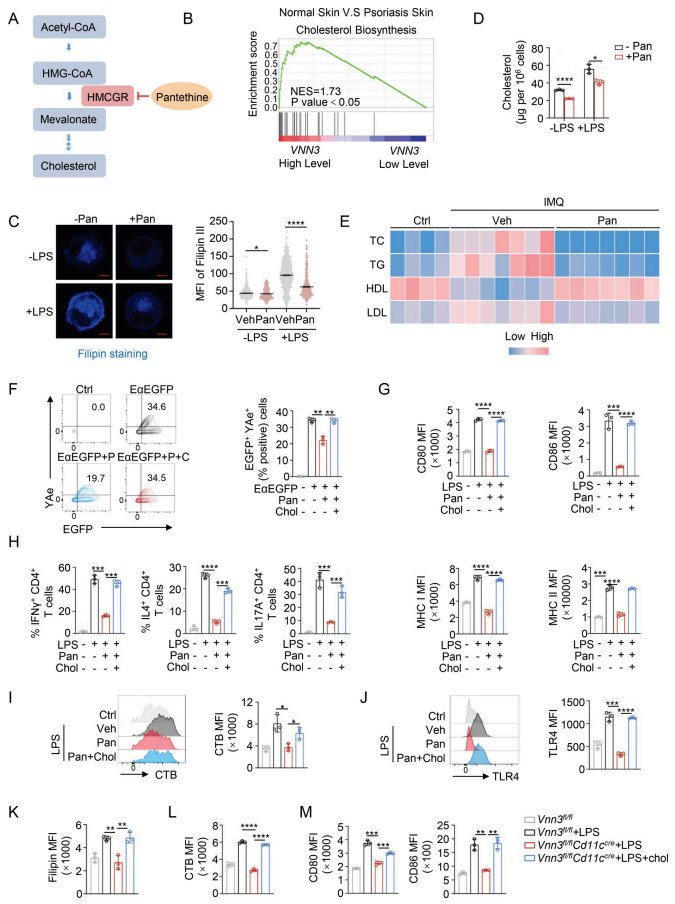
第五に、薬理学的阻害も同様に有効である。Vanin阻害剤RR6は細胞内パンテチンを上昇させ、コレステロールと脂質ラフトを低下させ、DCの抗原提示およびT細胞活性化能力を減弱させ、IMQモデルにおいて皮膚炎を軽減した。
新規性または突破口
本研究の新規性は、一つの代謝経路を具体的な細胞学的機構に結びつけた点にある。Vaninは漠然とした炎症マーカーではなく、パンテチンを消費し、膜コレステロールを上昇させ、脂質ラフトを再構築することによって、TLR4シグナル伝達に直接影響を及ぼすのである。
もう一つの注目すべき観察は、Vnn3の欠失がDCを耐性表現型へと誘導するのではなく、その活性化能力を全体的に減弱させるという点である。これは「DCの抑制」と「耐性の誘導」の違いを理解する上で示唆的な意味を持つ。
さらに、研究は患者由来の乾癬およびSLE細胞においてパンテチンとRR6の抑制作用を検証し、小規模な臨床試験を報告した。局所外用に加えて経口パンテチンを追加したところ、12週時点でPASIおよびPGAスコアの低下がより顕著であり、脂質異常症を合併する患者では利益がより突出しており、治療関連の有害事象は観察されなかった。著者らは同時に、この試験は実現可能性の検証であり、DC内在性経路が臨床的利益の唯一の原因であることを直接証明するものではないと強調している。
実際的意義:代謝介入のもう一つの考え方
臨床およびトランスレーショナル研究にとって、この研究はコレステロール代謝が操作可能な免疫調節ノードとなりうることを示唆する。パンテチン自体は長年にわたり脂質管理に用いられてきた低分子チオール化合物であり、安全性の記録が長いことから、「古い分子、新しい用途」の探索に利便性を提供する。
しかし、解釈には抑制が必要である。機構的エビデンスは主にマウスBMDCおよびIMQモデルに由来し、IMQモデルはヒト乾癬を完全に代表するものではない。患者細胞実験はin vitroの結果であり、臨床試験はサンプルサイズが小さく、単施設であり、短期間の追跡である。Vaninは多種の免疫細胞および間質細胞に発現しており、その作用がDCに限定されるかどうかについても、著者らは明示的に今後の研究に委ねている。
まとめと考察
この研究はVanin-パンテチン-コレステロール軸をDC活性化の中心に位置づけ、自己免疫疾患の代謝介入に対して機構的裏付けのある候補方向を提供した。トランスクリプトームの手がかりから遺伝子ノックアウト、薬物介入、患者細胞、さらには小規模な臨床観察に至るまで、エビデンスの連鎖は比較的完全であるが、各環の適用範囲は今後の研究によって明確化される必要がある。
一つの考察に値する問いは、コレステロール低下自体がDC機能を調節できるのであれば、臨床で広く使用されているスタチン系薬剤も、特定のDCサブセットおよび炎症背景において同様の免疫調節効果を生じうるか、という点である。既存の研究で報告されている結果は一致しておらず、これこそが次に比較対照実験を設計して答えるべき点であるかもしれない。