遺伝性小脳失調症は長らく、介入が困難な神経変性疾患群と見なされてきた。しかし、原因遺伝子が分泌性シナプス組織因子をコードする場合、状況はまったく異なる可能性がある。最新の研究は、CBLN1 遺伝子の両アレル変異によって引き起こされる早発性失調症の核心的メカニズムが、実にシナプス外因子の欠乏であること——そしてこの状態が AAV を介した遺伝子送達によって成体期に可逆的に改善しうることを明らかにした。
臨床表現型から原因遺伝子へ:二家系の鍵となる手がかり
研究チームは、近親婚のエジプト人家系2家系において早発性小脳失調症の患者を発見した。症状は生後3〜4か月齢という最も早い時期に現れ、異常眼球運動および運動発達遅延として表れた。病期の進行に伴い、患児には体幹および四肢の失調、筋緊張低下、進行性の歩行障害が出現した。脳 MRI は小脳萎縮を示し、虫部が最も顕著であった。
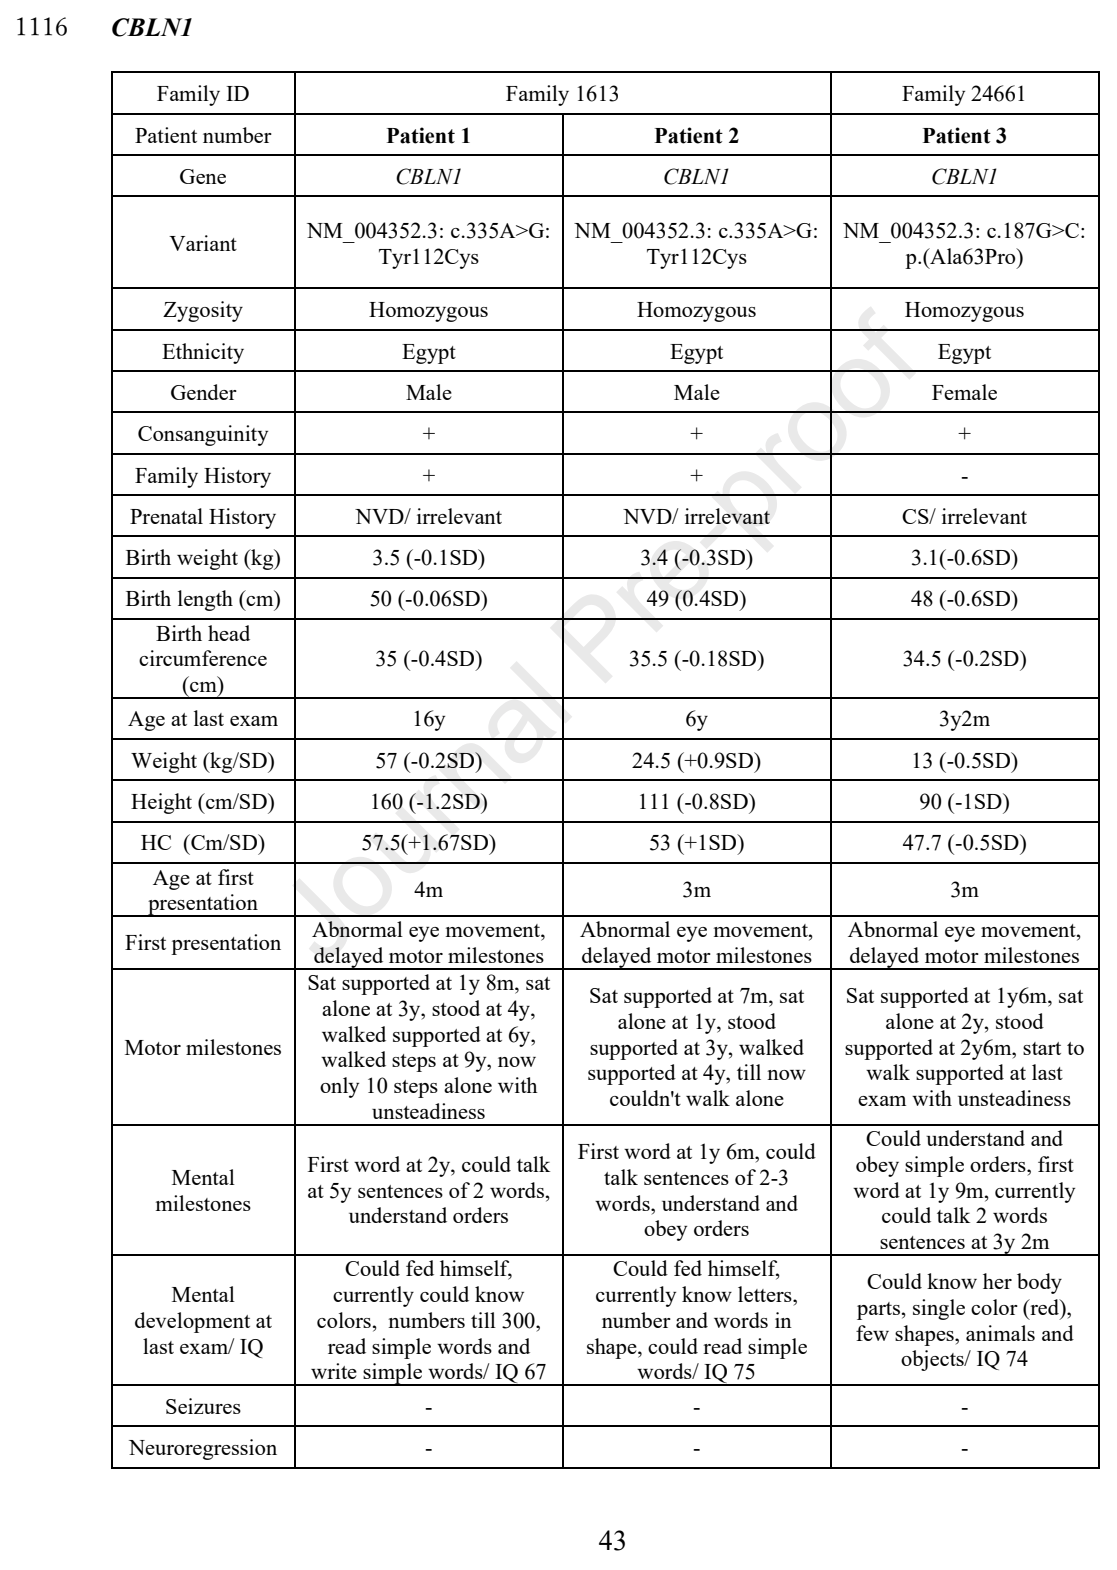
全ゲノムシーケンシングにより、2家系においてそれぞれ CBLN1 遺伝子のホモ接合ミスセンス変異が同定された:c.187G>C (p.A63P) および c.335A>G (p.Y112C)。Sanger シーケンシングは変異と疾患の共分離を確認し、常染色体劣性遺伝形式に合致した。
CBLN1 がコードする Cbln1 タンパク質は、平行線維-プルキンエ細胞(PF-PC)シナプスの鍵となる組織因子である。これは分泌性糖タンパク質として、シナプス前ニューロトキシンとシナプス後グルタミン酸受容体 δ2(GluD2)を橋渡しし、シナプス形成および長期的維持に極めて重要である。これまで Cbln1 ノックアウトマウスは重度の PF-PC シナプス欠陥を示していたが、この遺伝子がヒト疾患と関連することが証明されたことはなかった。
変異がもたらす機能的な細胞外欠失
構造解析により、A63 および Y112 の2つの残基は CBLN1 三量体サブユニットの接触面付近に位置づけられた。これは変異がタンパク質のオリゴマー化を破壊し、ひいては安定性、細胞内輸送、および分泌に影響を及ぼす可能性を示唆する。in vitro 実験はこの仮説を裏付けた:両変異体は HEK293 細胞における定常状態のタンパク質レベルが著しく低下し、かつ条件培地中には分泌タンパク質がほとんど検出されなかった。
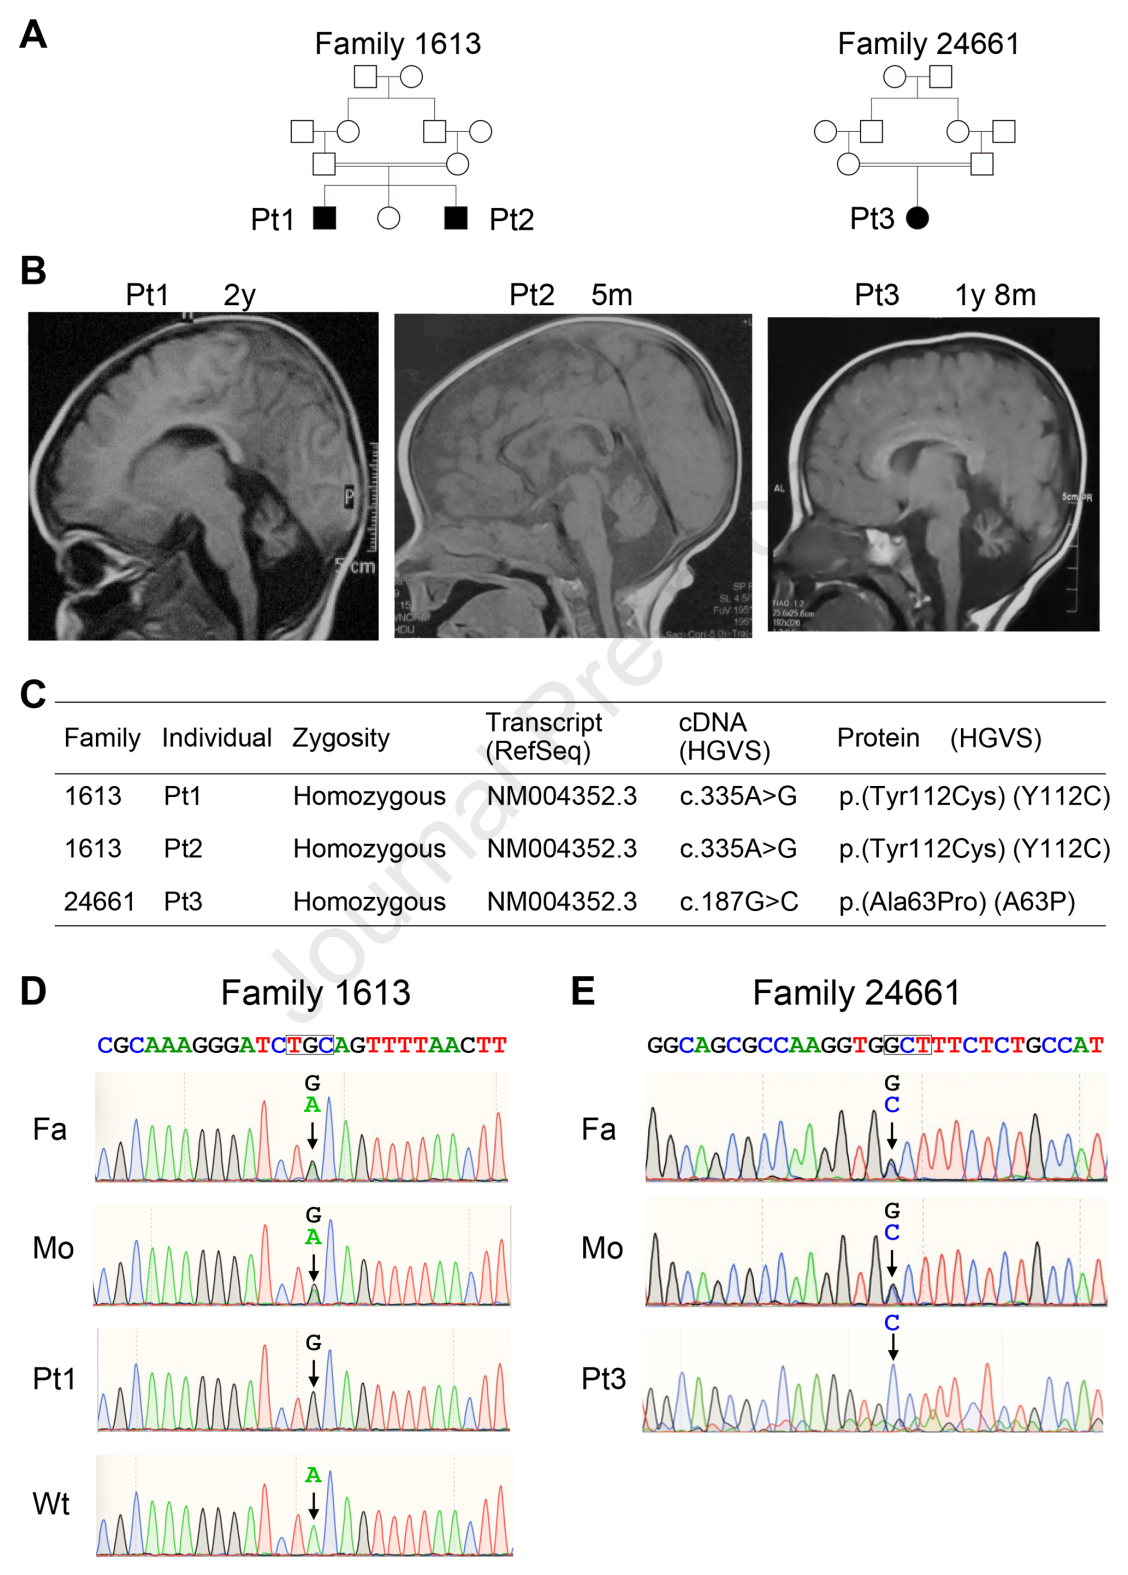
糖鎖修飾解析はさらに精緻なメカニズムを明らかにした。野生型 CBLN1 はエンドグリコシダーゼ H に抵抗性の成熟糖型を含み、タンパク質が小胞体/シスゴルジ体を経てプロセシングを完了したことを示す。一方、両変異体では成熟糖型が著しく減少し、タンパク質が初期分泌経路に滞留していることを示した。この順行輸送の障害は、細胞外 CBLN1 の利用可能性の大幅な低下を直接もたらす。
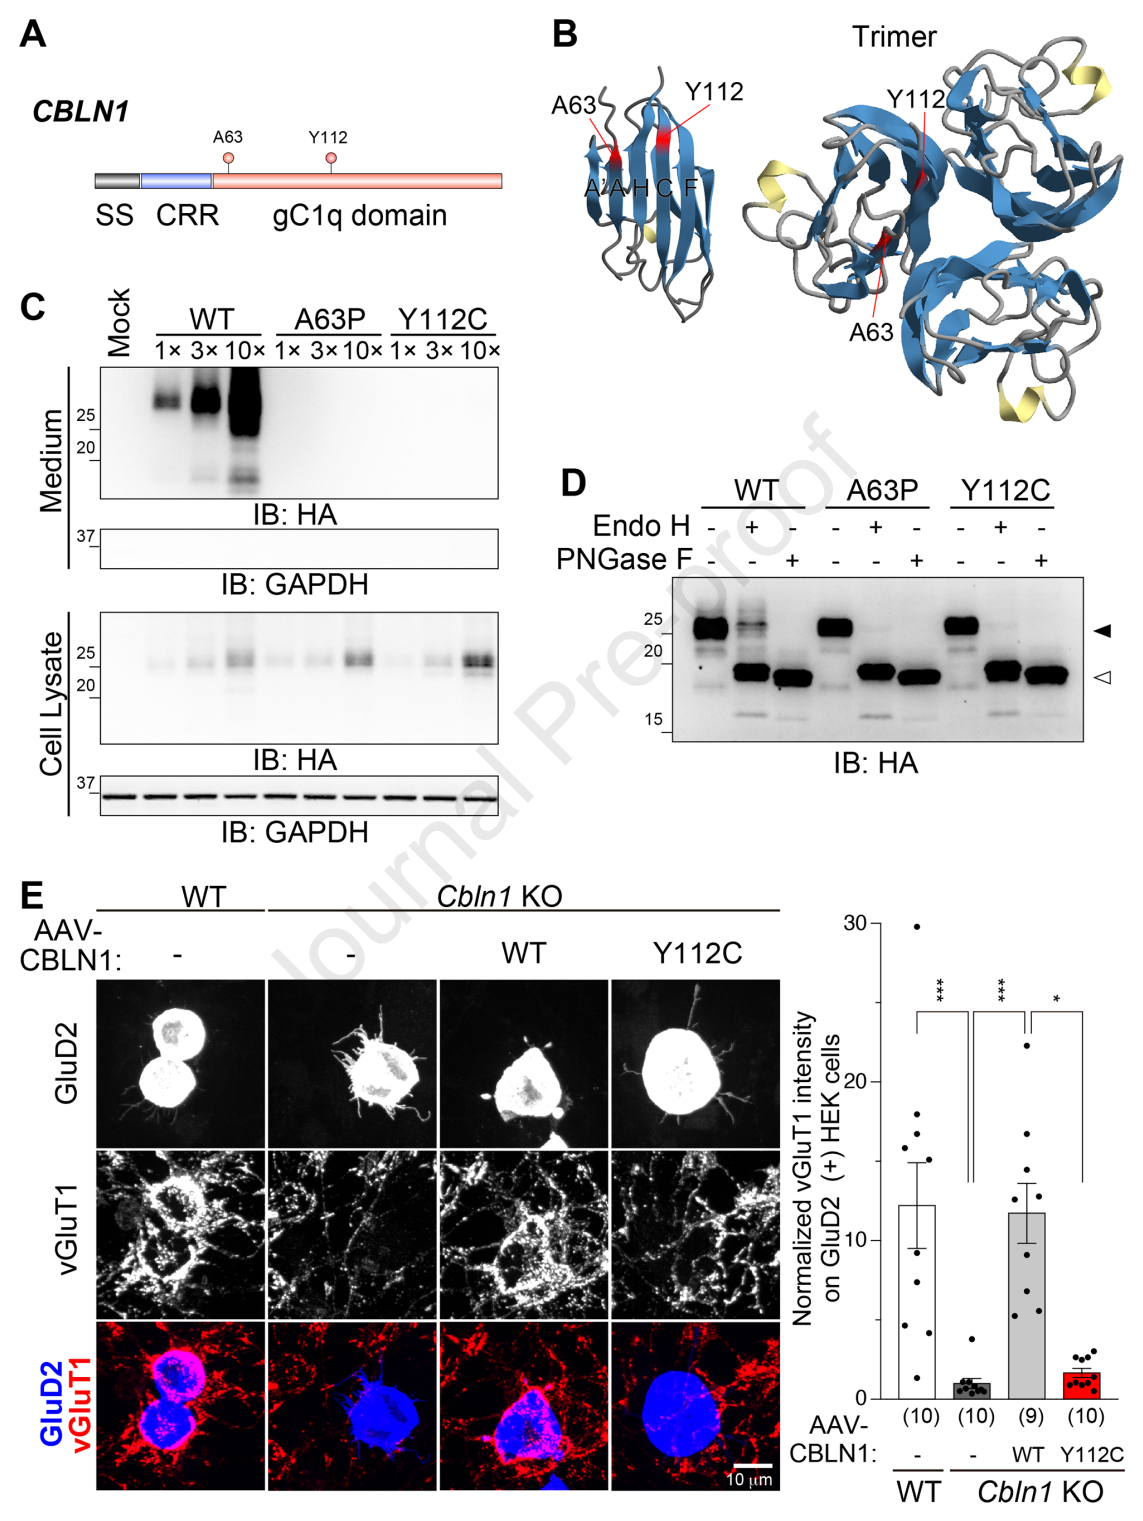
機能実験はこの結論をさらに検証した。人工シナプス形成実験において、CBLN1-Y112C を発現する小脳顆粒細胞は、GluD2 を発現する細胞上でシナプス前分化を誘導できず、Cbln1 ノックアウト細胞の挙動と一致した。これは変異タンパク質が機能レベルにおいて完全欠失と同等であることを示す。
ノックインマウスモデル:分子欠陥から行動表現型へ
生体内で疾患メカニズムを検証するため、研究者らは Y112C 変異を保有する Cbln1 ノックインマウスを作出した。ホモ接合変異マウスはメンデル比で出生し、小脳の葉状構造および層状配列はほぼ保たれていたが、小脳体積は著しく減少した——虫部横断面積は野生型と比較して約 28% 減少し、患者の画像所見と一致した。
免疫組織化学は、ノックインマウスの小脳皮質においてシナプス局在 Cbln1 シグナルがほとんど検出されず、Cbln1 ノックアウト組織と高度に類似していることを示した。行動学的解析は一連の欠陥を明らかにした:変異マウスは回転棒上で数秒以内に落下し、歩行分析は後肢協調の異常を示し、ビデオ眼振図記録は異常に増大した自発眼運動を記録した——患者の運動および小脳眼運動表現型を正確に再現していた。
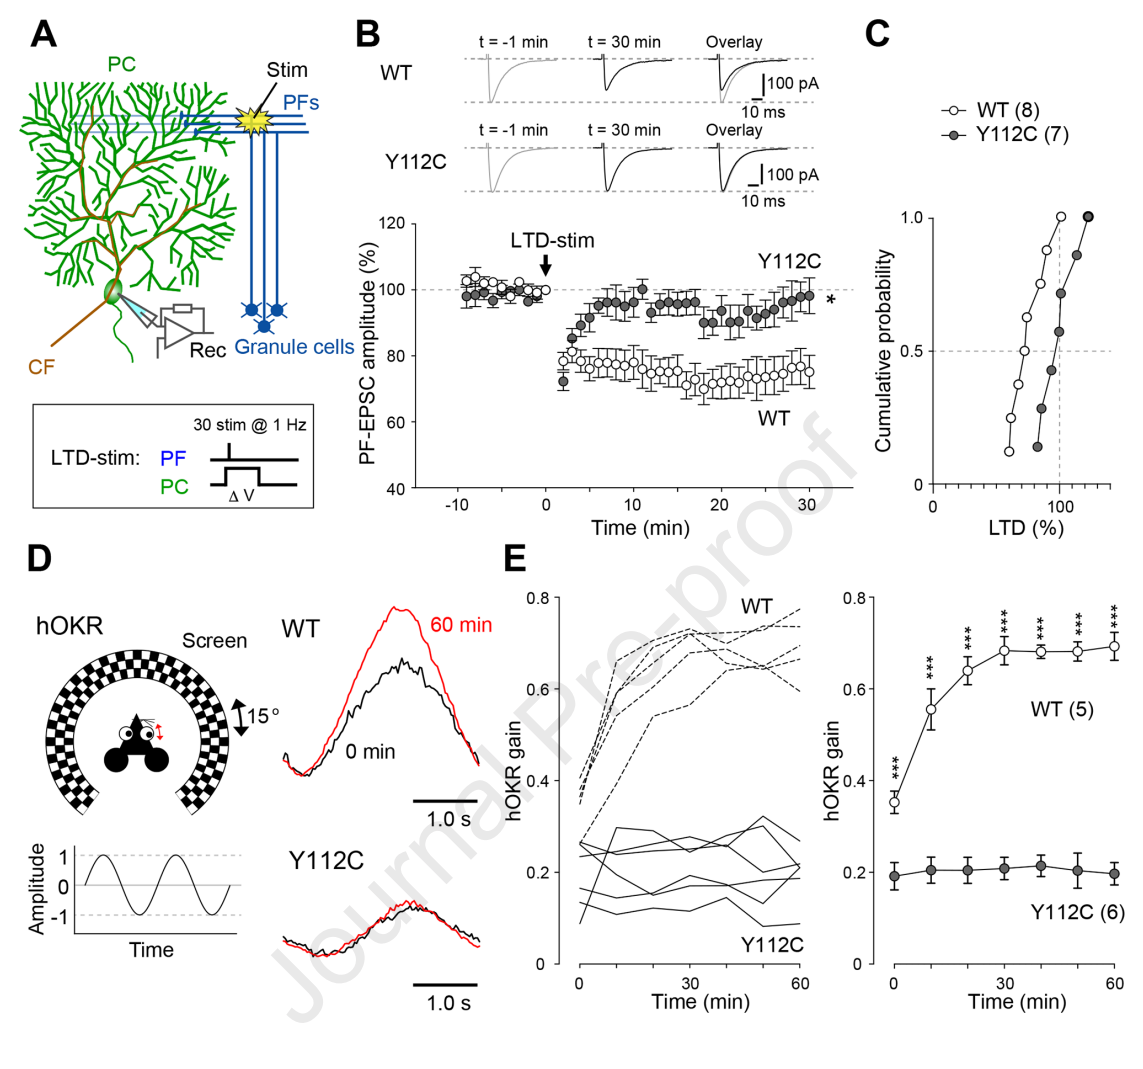
電気生理学的記録はシナプスレベルでの異常をさらに明確にした。変異マウスでは PF 誘発 EPSC 振幅が著しく低下し、二連パルス促通が増強され、シナプス前放出確率の低下を示唆した。さらに重要なことに、小脳運動学習の中核メカニズムである PF-PC 長期抑圧(LTD)は変異マウスにおいて完全に欠失し、視運動性眼球反応(OKR)適応能力も重度に障害されていた。
アストロサイト標的 AAV:成体期修復の可逆的戦略
組換え Cbln1 タンパク質の直接送達は変異マウスの運動機能を一時的に改善したが、効果は約1週間しか持続しなかった。これにより研究者らは、持続的な細胞外 CBLN1 を供給しうる戦略の探索へと向かった。鍵となる設計上の決定は細胞供給源の選択であった:顆粒細胞に直接 CBLN1 を発現させる試みはプロモーター活性の不足により失敗し、研究はアストロサイトへと目を向けた。
アストロサイトは分子層において PF-PC シナプスと緊密に隣接し、Bergmann グリア突起がシナプス構造を取り囲み、理想的な局所分泌微小環境を構成する。さらに重要なことに、CBLN1 は細胞外で機能するため、その治療効果は主に細胞外での利用可能性とシナプス標的化に依存し、必ずしも内在性神経細胞由来で発現する必要はない。トランスジーンを非神経細胞に限定することは、異所性神経細胞発現がシナプス形成を妨げるリスクを低減しうる。
研究者らは、アストロサイト特異的プロモーター GfaABC1D によって HA-CBLN1 の発現を駆動する AAV ベクターを構築し、眼窩後注射により成体変異マウスへ全身性に送達した。免疫組織化学は広範な小脳への導入を確認し、HA シグナルは分子層に富み GluD2 と共局在し、分泌された CBLN1 がシナプス部位に到達したことを示した。
治療効果は目覚ましいものであった。処置群マウスでは PF-PC シナプスの前後対合が改善し、PF 伝達機能が回復し、CF 単一神経支配が再構築され、LTD の再誘導が成功した。行動レベルでは、変異マウスは OKR 適応能力を回復し、回転棒および treadmill の成績は野生型レベルに近づき、異常な自発眼運動は是正された。これらの改善は注射後1〜2か月で定量的に確認され、一部の表現型改善は少なくとも6か月持続した。
プロセスへの示唆と未解決の問い
この研究の価値は、CBLN1 欠陥を治療可能なシナプス病として確立したことにとどまらず、AAV プロセス開発に多面的な示唆を与える点にある。
標的細胞選択の戦略的意義:治療タンパク質が細胞外で機能する場合、内在性発現細胞は唯一の選択肢ではない。アストロサイトは代替の産生源として、解剖学的近接性と分布の広範性という利点を兼ね備える。これは、プロセス開発において細胞種特異性の追求に限定せず、異なるプロモーター-細胞の組み合わせの適合性を系統的に評価すべきことを示唆する。
送達経路と生体内分布:全身性送達は広範な小脳への導入を実現したが、海馬や大脳皮質など脳外領域にも異所性発現を生じた。この分布は内在性 Cbln1 パターンとは異なり、未知の脳外効果をもたらす可能性がある。プロセスにとって、これは治療的分布と潜在的リスク分布を区別する、より精緻なベクター生体内分布評価系の構築が必要であることを意味する。
タンパク質補充 vs 遺伝子送達の持続性のトレードオフ:組換えタンパク質の直接送達は効果が短命である一方、AAV を介した持続的発現は長期的修復の可能性を提供する。この対比は、持続的な分泌タンパク質を必要とする場面における遺伝子送達のプロセス上の価値を強化し、半減期と投与頻度を送達戦略選択の中核パラメータとすべきことを示唆する。
成体期可逆性のメカニズム的意義:広範な表現型の逆転は、かなりの部分の病理的変化が構造的損傷ではなく機能的であることを示す。これは患者選別および臨床試験デザインに直接的な意義を持つ——たとえ画像上すでに小脳萎縮が示されていても、シナプスレベルでの機能修復が臨床的便益をもたらしうる。
深く考える価値のある問いがある:分泌タンパク質の産生源としてのアストロサイトの成功は、分泌性シナプス組織因子の欠陥に起因する他の神経疾患にも同様の戦略を採用しうることを意味するのか。治療標的が神経細胞内からシナプス間隙へと移行するとき、ベクターの指向性と発現持続性に対する我々の要求は、再定義される必要があるのだろうか。