『Science Translational Medicine』に発表された前臨床研究は、スプリットインテインタンパク質トランススプライシングと筋指向性AAVベクターを用いて、LGMDR2マウスモデルにおいて全長dysferlinを再構築し、疾患の早期と後期の両方で筋力と病理の改善を観察した。研究は同時に、この戦略がタンパク質回復効率において従来のDNA相同組換え二重ベクター法よりも優れていることを示した。
パッケージング上限に行き詰まった遺伝子治療の難題
肢帯型筋ジストロフィーR2型(LGMDR2、旧称LGMD2B)は DYSF 遺伝子の変異によって引き起こされる。この遺伝子はdysferlin——237 kDaの筋鞘修復タンパク質で、7つのカルシウム依存性C2ドメイン、2つのferlinドメイン、およびC末端膜貫通ドメインを含む——をコードする。
dysferlinが欠失すると、筋線維は機械的活動によって生じた筋鞘損傷を効果的に修復できなくなり、進行性の筋萎縮、炎症、筋力低下が生じる。
遺伝子補充治療は直接的な道筋に見える。しかし問題は、dysferlinのcDNAが6.2 kbに達するのに対し、AAVベクターのパッケージング上限が約4.7 kbであることだ。
差は大きくないが、全長タンパク質を「収める」には十分すぎるほどだ。
短縮版の「micro-dysferlin」も試みられたが、機能と局在のいずれも理想的ではなかった。治療に必要なのは全長タンパク質である。
二つの二重ベクター戦略:DNA組換えとタンパク質スプライシング
パッケージング制限を回避するため、学界はこれまで主にDNAレベルでの相同組換えに依存してきた。二つのAAVがそれぞれ5′端と3′端の配列を運び、ベクターゲノムのタンデム組換えによって完全なオープンリーディングフレームを組み立てる。
この戦略は既にヒト筋肉内注射研究(NCT02710500)に進んでいるが、いくつかの固有の短所が存在する。必要なウイルス用量が高く、組換え効率が限られ、非特異的組換えによる異常転写産物が生じる可能性がある。
本研究が提唱する代替案はタンパク質トランススプライシング(PTS)である。これはDNA組換えに依存せず、翻訳後レベルでスプリットインテインを用いて二つのポリペプチドhalfを継ぎ目なく連結する。
dysferlinのモジュール式ドメイン構造と細胞質側N末端は、筋鞘ターゲティング能を損なうことなく分割するのに適している。
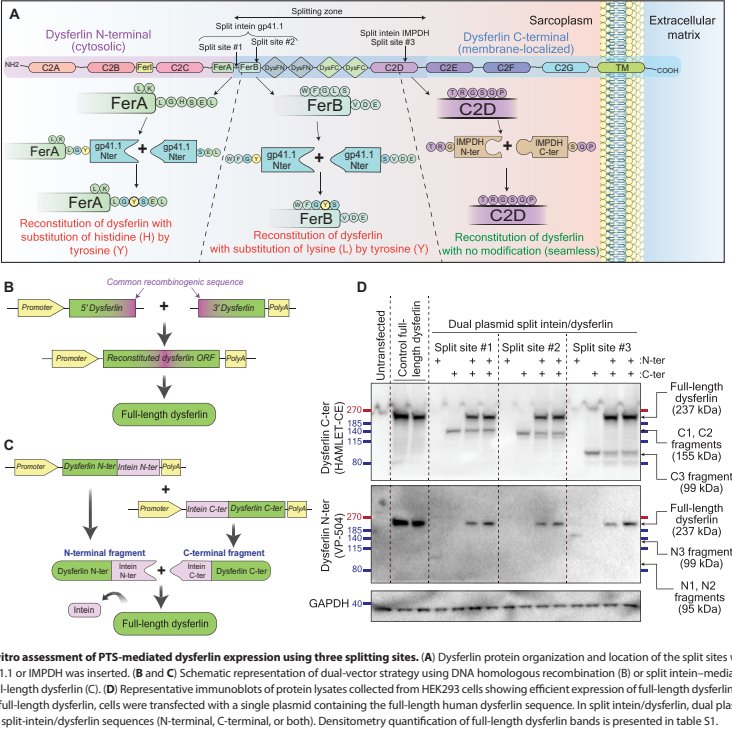
著者らはdysferlin配列中にsplit inteinを挿入可能な3つの部位を予測した。そのうちIMPDHインテインは3番目の部位(Gly1263とSer1264の間)で「無痕跡」連結を実現でき、免疫ブロットにおいて全長タンパク質の発現が最も高かった。
体外検証:再構築されたタンパク質は筋鞘を修復できるか
HEK293細胞において、3つのインテインの組み合わせはいずれも全長dysferlinを再構築できたが、IMPDHの3番目の部位での発現レベルが最も高かった。
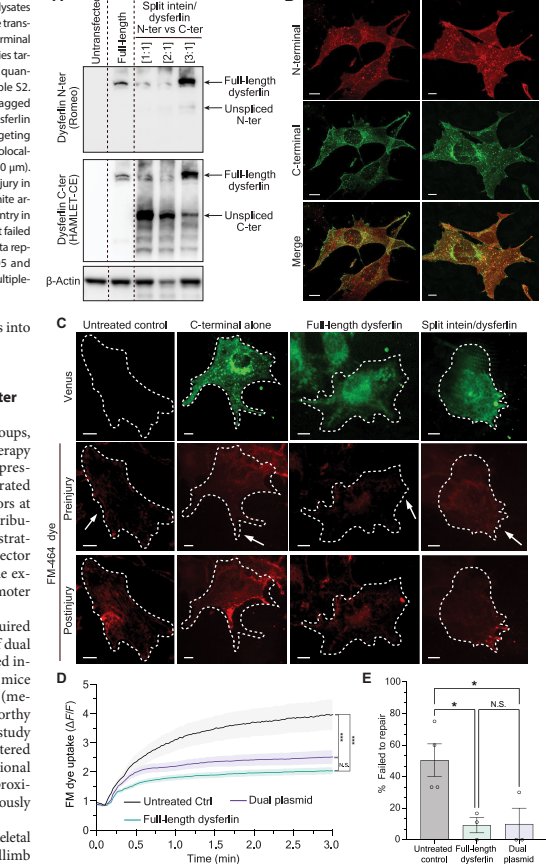
続いて、研究はdysferlin欠損C2C12筋芽細胞において機能を検証した。N末端とC末端のプラスミドを3:1の比率で共トランスフェクションすると、全長タンパク質の発現は堅牢であった。
レーザー損傷実験では、スプリットインテインdysferlinを発現する細胞は色素の取り込みが有意に減少し(P = 0.0075)、修復失敗率が4倍以上低下した。
これはつまり——再構築されたタンパク質は単に「存在する」だけでなく、機能的に単一ベクターで発現させた全長dysferlinに近いということである。
生体内比較:効率の差はどこに現れるか
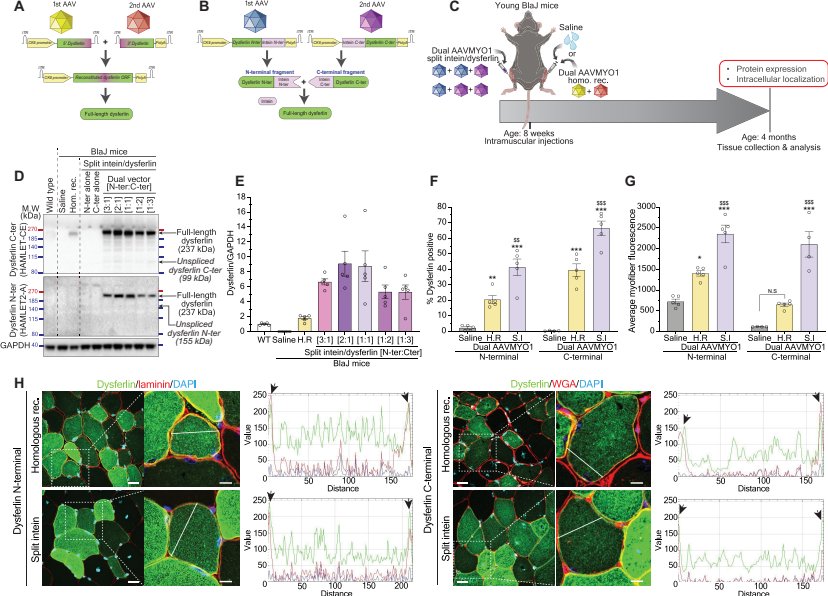
研究はSI-DysfとHR-Dysfをそれぞれ筋指向性AAVMYO1ベクターにパッケージングし、筋肉特異的CK8eプロモーターで駆動した。
8週齢BlaJマウスの前脛骨筋に同一総用量(6×10¹⁰ vg)を注射後、4か月でサンプルを採取した。すべてのSI-DysfのN:C比はHR-Dysfよりも高いレベルの全長タンパク質を産生し、2:1と1:1の比率が最適であった。
免疫染色では、SI-Dysf群のdysferlin陽性筋線維数はHR-Dysf群の約2倍であり、シグナルもより明るかった。
さらに重要なのは、SI-Dysf群では未スプライシングのN末端またはC末端断片がほとんど検出されなかったことである。一方HR-Dysf群では野生型の約2倍のdysferlin発現レベルが存在した——ただしその中には短縮断片が含まれていた。
全身送達の用量と分布
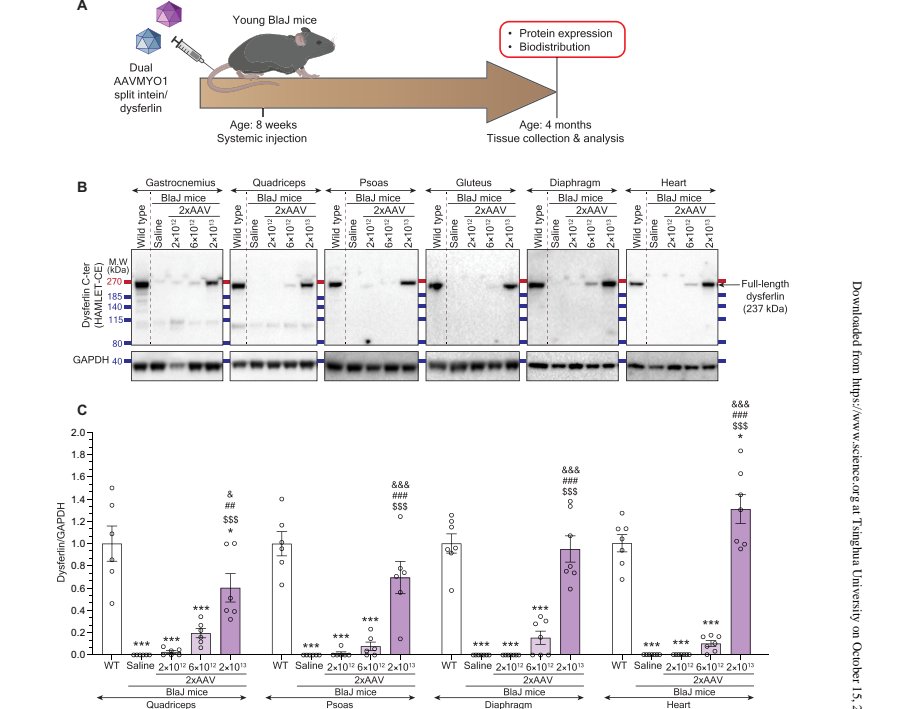
LGMDR2は複数の筋群に及ぶため、局所注射では十分にカバーできない。研究は尾静脈注射により3つの用量を検討した:2×10¹²、6×10¹²、2×10¹³ vg/kg。
2か月後、低用量群では全長タンパク質が検出されず、中用量群では野生型の約10–40%、高用量群では大腿四頭筋と腰大筋で約70%に達し、横隔膜と心臓ではさらに高かった。
注目すべきは、最高用量でも従来のAAV血清型を筋疾患に用いる前臨床または臨床用量より10倍低く、以前のHR-Dysf法よりも約5倍低いことである。
疾患早期と後期:機能的エンドポイントにおける差異
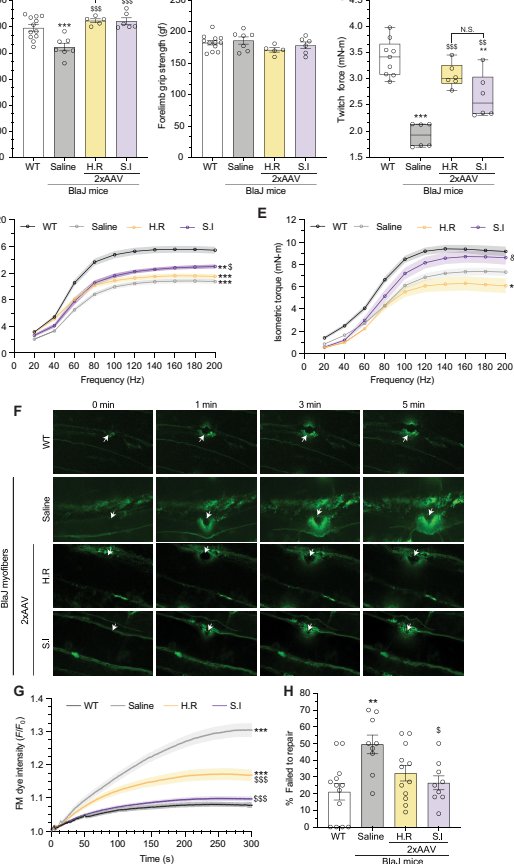
6か月齢(疾患発症期)のBlaJマウスにおいて、2×10¹³ vg/kgを全身投与し、6か月後に評価した。
SI-Dysf群は腓腹筋と大腿四頭筋において野生型の60–70%のdysferlinレベルに達したのに対し、HR-Dysf群はわずか5–15%であった。ベクターゲノム定量は両群でAAVの存在量が類似していることを示した——差異はスプライシング効率に由来し、送達効率によるものではない。
組織学的には、SI-Dysf群で中心核筋線維が減少し、筋線維横断面積が増加し、脂肪浸潤が減少した。
機能的には、全肢握力の欠損が阻止され、腓腹筋の単収縮力が回復し、遠心性収縮後の筋力回復がより良好であった。レーザー損傷実験では、SI-Dysf群の筋線維修復能が野生型に近く、修復失敗率が約2倍低下した。
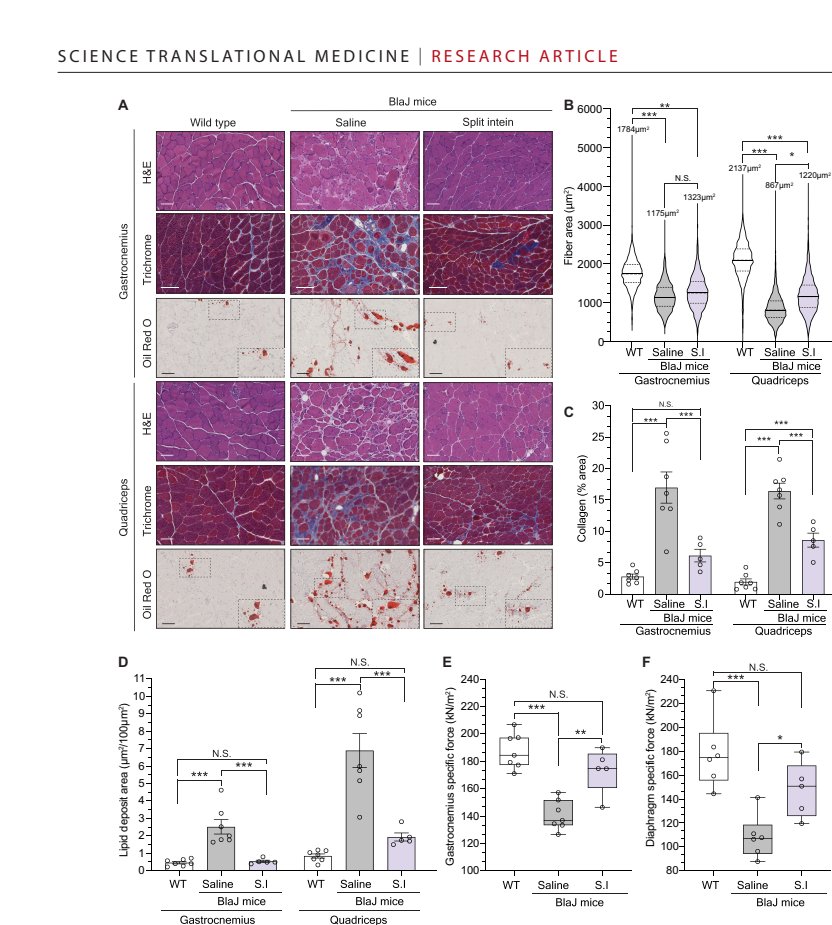
12か月齢(後期症状)のマウスにおいて、同用量で6か月治療後、腓腹筋と横隔膜のdysferlinレベルは野生型に達するかそれを超え、大腿四頭筋は野生型の2–3倍であった。
線維化面積は約18%から6–9%に減少し、脂質沈着が有意に減少し、腓腹筋と横隔膜の特異的収縮力が改善した。
製造プロセスの視点:この研究が残したもの
AAVプロセス開発の観点から見ると、この研究には記録に値するいくつかの観察がある。
第一に、二重ベクターの比率制御はプロセスパラメータであり、付随的な細部ではない。 生体内のN:C比は全長タンパク質の産生量と未スプライシング断片の残存に影響する。1:1と2:1が最適な挙動を示すが、バッチ間の比率一貫性をいかに保証するかは、スケールアップ生産が答えなければならない問題である。
第二に、スプライシング効率は用量要求を部分的に相殺できる。 同一ベクターゲノムレベル下で、PTS戦略のタンパク質産出はDNA組換えよりも有意に高い。これは、有効性を追求する際に、ベクター設計が単に用量を増やすよりも効果的でありうることを意味する。
第三に、短縮断片の検出は品質管理の視野に含めるべきである。 免疫ブロットにおける未スプライシングN末端(155 kDa)およびC末端(99 kDa)断片の存在は、タンパク質レベルの製品関連不純物分析が全長バンドだけを見てはならないことを示唆する。
第四に、研究自体に未解決の問題が残されている。 著者らは、スプリットインテインは多くが微生物由来であり、ヒト細胞における発現、半減期、免疫原性はまだ不明であると指摘している。AAVベクター、インテイン構成要素、および再構築dysferlinに対する免疫応答も深く特徴づけられていない。
さらに、dysferlinの発現はモザイク状に分布し、すべての筋線維が均一に発現するわけではない。次世代の筋指向性カプシド、より強力な筋肉特異的発現カセット、またはタンパク質配列の修飾によって、より均一な分布を実現する方法は、依然として未解決の問題である。
ベクター容量が厳格な制約となったとき、DNAレベルでの組換え法を探し続けるのか、それともタンパク質レベルでスプライシングの論理を再設計するのか。この選択は、dysferlinだけの標的にとどまらないかもしれない。